宇宙可达性迁徙模型:跨恒星系统生命转移的分层可达窗口与 GJ 710 参数化分析
张 永
独立研究者,安徽 合肥 230000
基金项目:无 通讯作者:张永,E-mail:20747297@qq.com
摘 要:一颗行星上生命的最早记录并不逻辑地等同于生命第一次在该行星发生。为把“生命发生”与“生命抵达”分开讨论,提出宇宙可达性迁徙模型(Cosmic Reachability Migration Model,CRMM),将跨恒星系统生命转移表述为随时间变化并逐层收缩的可行域。模型依次定义运动学窗口 W_kin、任务物理窗口 W_phys、具体技术架构窗口 W_arch 与最终有效生命迁徙窗口 W_eff,并要求每一层均由独立约束判定而非由单一“综合成本”替代。以未来 GJ 710—太阳系近遇为真实动力学参数化案例,采用最近距离 0.0621 pc、近遇相对速度 13.899 km/s 的观测解,在最大航行时间 1000 yr 的示例条件下,17 km/s 速度基准无运动学窗口,而 100、300 和 1000 km/s 分别形成约 11.4、42.3 和 143.6 kyr 的有限发射窗口。进一步加入受控交会与寿命约束后,1000、48 和 8 yr 有效航行时间对应的最低理想总速度增量约为 122、2530 和 15180 km/s。Longshot 类可加速—减速架构在乐观理想包络下可产生非空 W_arch,而 Starshot 基准飞掠架构因缺少目标端受控制动,在“受控生命投放”定义下得到空窗口。最终 W_eff 还须与目标环境时间窗、进入与释放条件以及早期谱系建立条件求交。结果表明,天体近遇只提供机会,完整迁徙能力取决于动力学、工程、生物存续与生态建立的联合闭合。CRMM 的用途不是证明地球生命来自外部,而是为候选生命迁徙历史提供一套可参数化、可逐层排除和可证伪的研究框架。
关键词:生命起源;生命迁徙;宇宙可达性;星际转移;GJ 710;泛种论;天体生物学
Cosmic Reachability Migration Model: Hierarchical Reachability Windows for Interstellar Life Transfer and a Parameterized Analysis of GJ 710
ZHANG Yong
Independent Researcher, Hefei, Anhui, China
Abstract: The earliest record of life on a planet does not logically demonstrate that life first originated on that planet. To separate the problem of abiogenesis from the problem of arrival, this study proposes the Cosmic Reachability Migration Model (CRMM), a time-dependent framework in which interstellar life transfer is evaluated through a hierarchy of nested feasibility windows. The model distinguishes a kinematic window (W_kin), a mission-physics window (W_phys), an architecture-specific window (W_arch), and an effective life-transfer window (W_eff). Each window is defined by explicit constraints and can only remain unchanged or shrink when additional requirements are introduced. The future encounter between GJ 710 and the Solar System is used as an empirical dynamical parameterization rather than as evidence of biological transfer. Using the encounter solution with a closest approach of 0.0621 pc and a relative speed of 13.899 km s−1, and adopting an illustrative maximum flight time of 1000 yr, a 17 km s−1 benchmark produces no kinematic launch window, whereas 100, 300 and 1000 km s−1 yield finite windows of approximately 11.4, 42.3 and 143.6 kyr, respectively. Requiring controlled rendezvous changes the problem substantially: effective flight times of 1000, 48 and 8 yr imply minimum ideal total delta-v values of approximately 122, 2530 and 15180 km s−1. A Longshot-like acceleration–deceleration architecture can retain a non-empty architecture window under optimistic idealized assumptions, while the baseline Starshot flyby architecture fails the controlled-delivery criterion because no target-side braking system is included. The final W_eff additionally requires temporal overlap with a suitable target environment, successful entry and release, and non-zero probability of long-term lineage establishment. A minimal branching-process treatment shows that an initially subcritical environment cannot be rescued merely by increasing inoculum size. The framework therefore converts “stellar proximity” into a sequence of falsifiable filters. CRMM does not claim that terrestrial life has an extraterrestrial origin; instead, it provides a parameterizable method for testing candidate migration histories and for identifying the physical, engineering, biological, or ecological constraint that eliminates them.
Key words: origin of life; migration of life; cosmic reachability; interstellar transfer; GJ 710; panspermia; astrobiology
1 引言
生命起源研究通常回答“非生命物质如何形成能够复制、代谢、维持边界并参与达尔文演化的系统”[1,16]。但对一颗已经发现生命的行星而言,还存在另一个逻辑上独立的问题:该行星最早出现的生命,是否一定在当地首次发生。前者属于生命发生(abiogenesis),后者属于生命抵达(arrival of life)。如果最初生命材料曾从外部进入,后续数十亿年的演化仍然可以完全在本地连续发生,因此“本地演化记录”与“抵达以前的来源记录”不能简单等同。
泛种论长期研究生命或生命前体在天体之间的传播。火星—地球物质交换、岩石屏蔽、微生物空间存续以及星团内部物质交换等工作表明,传播链条中的抛射、航行、捕获和存活可以分别进入定量研究[2-7,17,26-27]。另一方面,银河宜居性与恒星动力学研究已显示,天体系统之间的空间邻接关系不是静态背景:恒星近遇、径向迁移和长期轨道演化会改变不同系统之间的历史距离与相对速度[9-13]。星际定居研究进一步指出,等待恒星接近本身即可显著改变跨恒星航行门槛[14-15,18]。
因此,CRMM 的目标并不是再次提出“生命可以传播”或“恒星会运动”,而是建立一套统一判定链:一个候选来源—目标系统在某一历史阶段首先必须进入动力学可达区;随后还必须通过交会、制动、寿命、能量与具体架构约束;最后还要满足目标世界环境、进入释放以及持续谱系建立条件。任何一层失败,都应使该候选迁徙历史被排除。本文将这一过程表述为一组逐层嵌套、随时间变化的“可达窗口”。
2 相关研究与 CRMM 的方法增量
2.1 从传播机制到历史可达性
现有自然泛种论与定向泛种论已经覆盖从物质抛射到生物存续的多个环节[2-7,17,27]。Lingam 等还用出生—死亡—迁徙过程研究天体环境中生命世界数量的统计演化[8]。这些工作说明,“生命是否能够从一个世界到另一个世界”本身并非无人讨论的问题。CRMM 所补充的变量是历史可达性:即传播链条能否在特定时间窗口内同时跨过来源系统、目标系统和任务能力的边界。
2.2 相对运动与星际迁徙
Carroll-Nellenback 等的银河定居模型、Haqq-Misra 与 Fauchez 的低质量恒星定居研究以及 Hansen 与 Zuckerman 关于利用恒星近距离经过降低星际迁徙门槛的工作,都表明恒星运动能够改变文明扩张的尺度[14-15,18]。因此,CRMM 不把“等待近遇”视为原创发现,而把它作为第一个过滤层:相对运动是否真的产生了一个有限而可计算的窗口;在加入真实任务约束后,该窗口是否仍然存在。
2.3 模型的整合性增量
本文的增量主要体现在三个方面。第一,把“近距离”改写为多约束可行域,并用 W_kin、W_phys、W_arch 与 W_eff 区分不同层级的可达性。第二,把“抵达系统”与“成功投放并建立持续生命谱系”分离,使目标环境和生态建立成为独立硬约束。第三,把窗口关闭后的再次隔离与来源记录丢失作为可观测性问题处理,但明确规定其不能反过来成为外部迁徙的正证据。
3 分层可达性模型
3.1 多约束瓶颈判定
设 A 为来源天体系统,B 为目标天体系统;q_i(t) 表示时间 t 下第 i 个任务需求,如距离、航行时间、总速度增量、能源、辐射剂量、载荷保护或目标进入条件;k_i(t) 表示对应能力上限。由于这些量具有不同物理量纲,本文不直接把它们线性相加,而用瓶颈比率进行判定:
ρ(t) = max_i [ q_i(t) / k_i(t) ] (1)
当且仅当 ρ(t)≤1 时,各项硬约束同时满足。综合成本 C*(t) 和能力 K*(t) 可以继续作为图示或降维摘要,但不再承担物理基本量的角色。
3.2 四级嵌套窗口
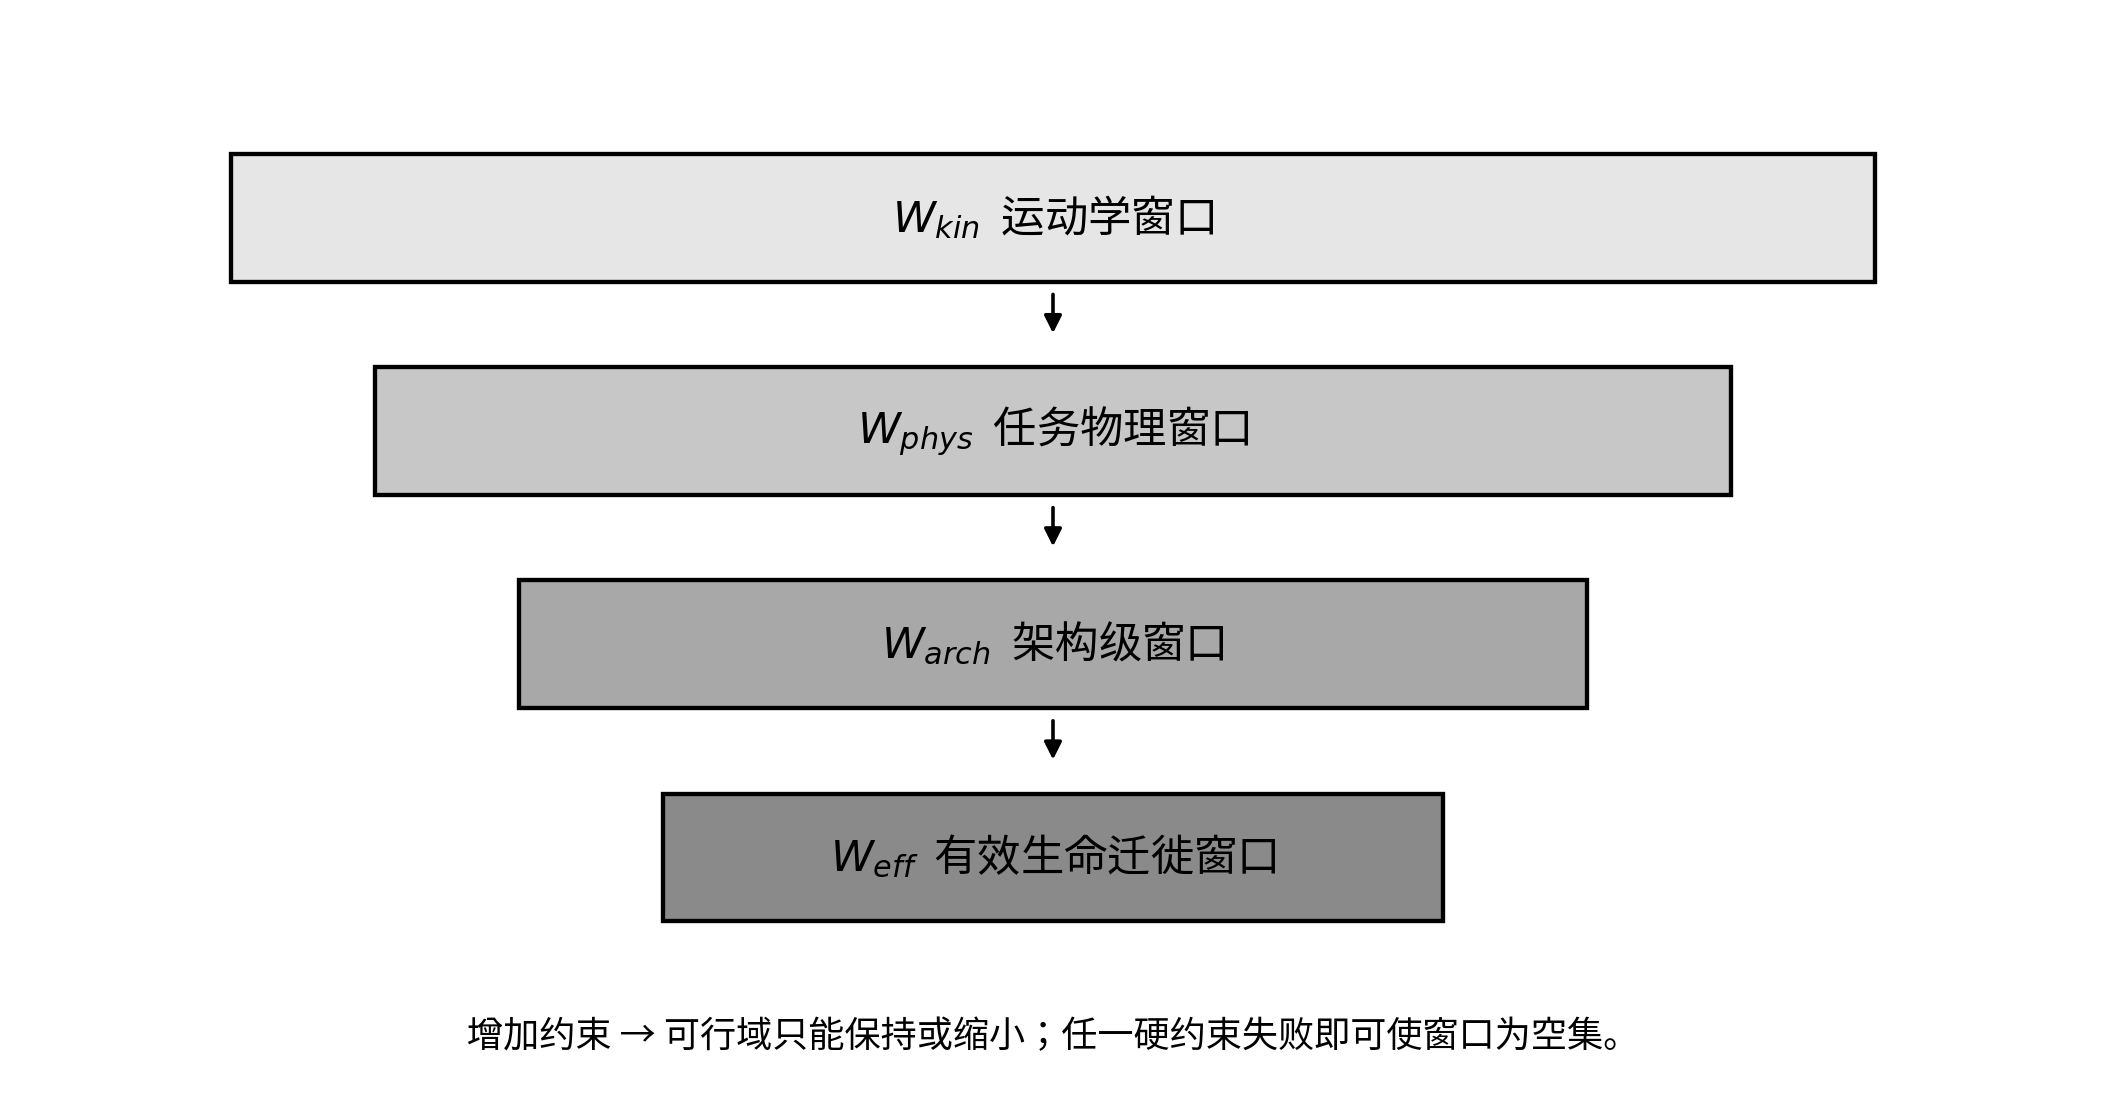
在此基础上定义四个逐级收缩的集合。W_kin 只回答给定相对运动、航行速度与最大航行时间时能否追上目标;W_phys 加入受控交会、制动、任务系统寿命、生物存续和能量等物理条件;W_arch 进一步指定一套真实或历史概念性的推进—制动—载荷架构;W_eff 最后要求目标环境、进入释放和谱系建立也同时满足。
W_eff ⊆ W_arch ⊆ W_phys ⊆ W_kin (2)
3.3 重复行动与累计成功概率
可达窗口只提供行动机会,不等于迁徙必然发生。令 λ_a(t) 为单位时间内可能携带生命的行动事件率,p_s(t) 为单次行动最终形成持续生命链条的条件概率,则有效事件率为:
λ_eff(t) = λ_a(t) · p_s(t) (3)
在把有效事件近似为非齐次泊松过程的最低阶表示下,窗口内至少发生一次有效迁徙的累计概率为:
P_m = 1 − exp[ −∫_W λ_eff(t) dt ] (4)
式(4)只表达“重复机会可以累积”的逻辑。若 ∫λ_eff dt 不大,长窗口仍可能对应低概率;因此“时间足够长就近乎必然”并不是一般结论。
4 GJ 710—太阳系近遇的真实动力学参数化
4.1 案例选择与观测参数
GJ 710 被选为首个真实案例,不是因为存在其拥有生命或宜居行星的证据,而是因为该近遇的距离、时刻和相对速度具有较好的观测约束。最新计算给出其约 1.3446 Myr 后掠过太阳,最近距离 b=0.0621±0.0023 pc,近遇相对速度 v_p=13.899±0.022 km/s[23];Gaia DR3 的独立研究得到约 0.0636 pc 的相近结果[24]。因此,它适合检验“真实天体相对运动能否产生有限可达窗口”。
4.2 运动学窗口
令 τ=0 表示最近距离时刻,并用近遇附近的局部直线运动作为第一阶近似。目标系统相对来源系统的距离可写为 D(τ)=√(b²+v_p²τ²)。若航行器以相对来源系统的恒定巡航速度 u 发射,最大允许航行时间为 T_max,则可以求得满足拦截条件的发射时刻集合 W_kin。该近似不用于长期银河轨道回溯,只用于近遇附近的任务窗口敏感性分析。
| 速度 u | T_max | 最近点直接飞行时间 | W_kin(相对近遇时刻) | 窗口宽度 |
|---|---|---|---|---|
| 17 km/s | 1000 yr | 约6203 yr | 空集 | 0 |
| 100 km/s | 1000 yr | 约613 yr | −6.72~+4.72 kyr | 约11.43 kyr |
| 300 km/s | 1000 yr | 约203 yr | −22.14~+20.14 kyr | 约42.28 kyr |
| 1000 km/s | 1000 yr | 约61 yr | −72.81~+70.81 kyr | 约143.63 kyr |
表 1 GJ 710 近遇下的运动学发射窗口(示例约束 T_max=1000 yr)
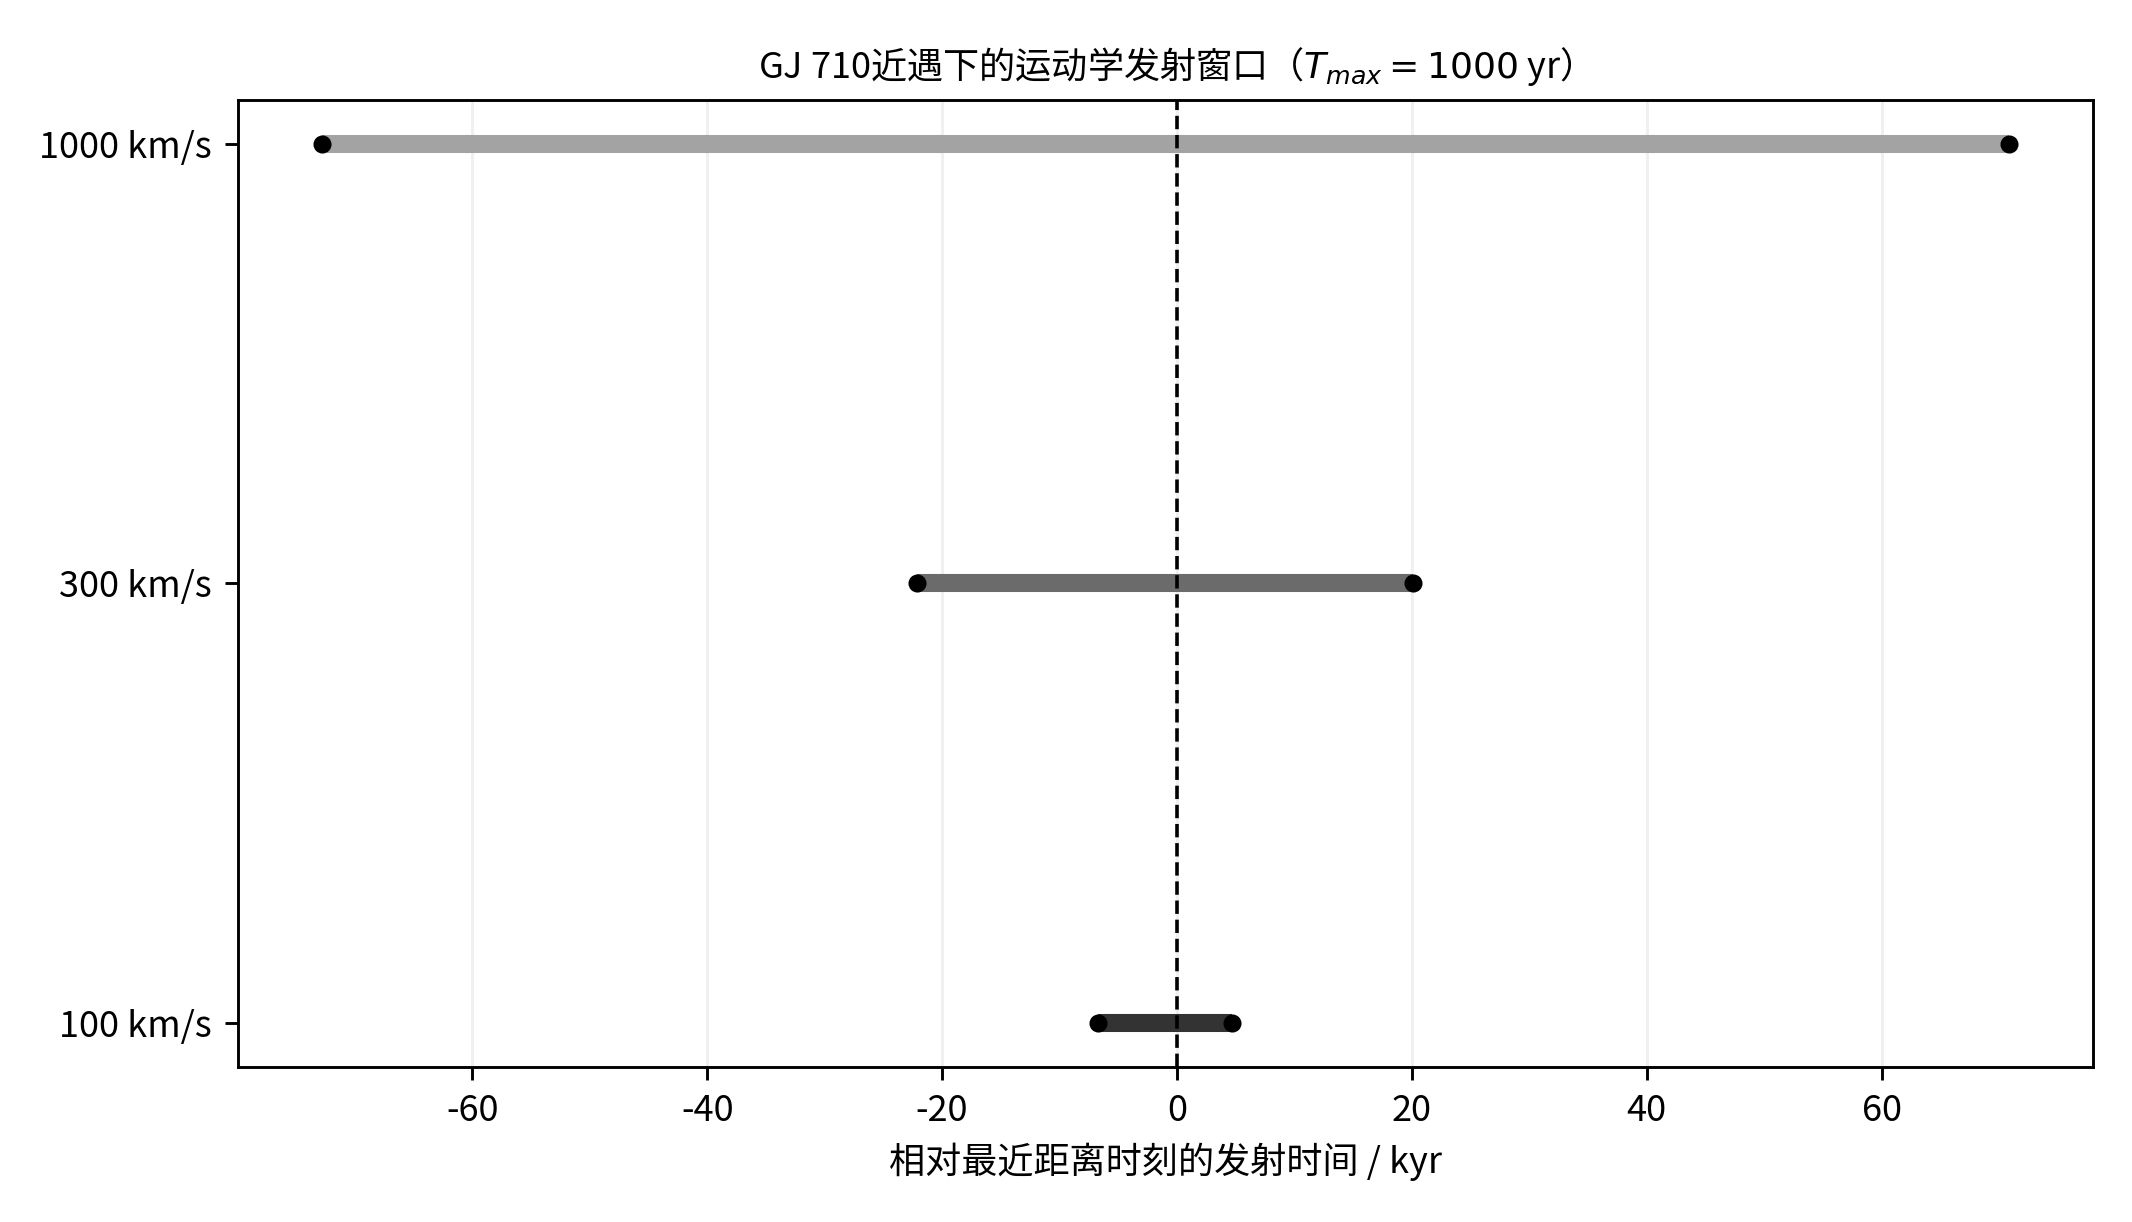
结果表明,动态近遇可以把“始终不可达”转变为“有限时期可达”,而窗口具有明确的进入与退出边界。17 km/s 取自 Voyager 1 日心速度量级,仅作为当前人类高速航天器的参照[25],不代表生命运输方案。
5 任务物理与技术架构过滤
5.1 受控交会与寿命约束
仅能高速穿越目标系统不能自动视为有效迁徙。由于 GJ 710 是否拥有可用于引力辅助或大气制动的行星尚未知,本文采用透明而偏严格的基准:航行器在星际段结束时完成与目标恒星系质心的速度匹配。若发射时刻为 τ,航行时间为 T,则理想出发与到达速度匹配需求分别为 v_dep(τ,T) 与 v_arr(τ,T),总速度增量为 Δv_rdv=v_dep+v_arr。对给定 T,最低值出现在最近距离前 T/2 发射、最近距离后 T/2 抵达:
Δv_min(T) = 2 √[ (b/T)² + (v_p/2)² ] (5)
式(5)给出了一个不含行星起飞、恒星引力井、推进剂质量、效率、导航和结构退化的乐观下限。把生物与系统寿命写成硬约束 T_lim=min(T_sys,T_bio),则允许航行时间越短,最低 Δv 越高。
| T_lim | 最低理想总 Δv | 物理含义 |
|---|---|---|
| 1000 yr | 约122 km/s | 强屏蔽/长期系统的宽松压力测试 |
| 48 yr | 约2530 km/s | Tanpopo 暗环境外推尺度,仅作压力测试 |
| 8 yr | 约15180 km/s | Tanpopo 紫外暴露上端尺度,仅作压力测试 |
表 2 GJ 710 完全交会基准下的寿命—速度增量门槛
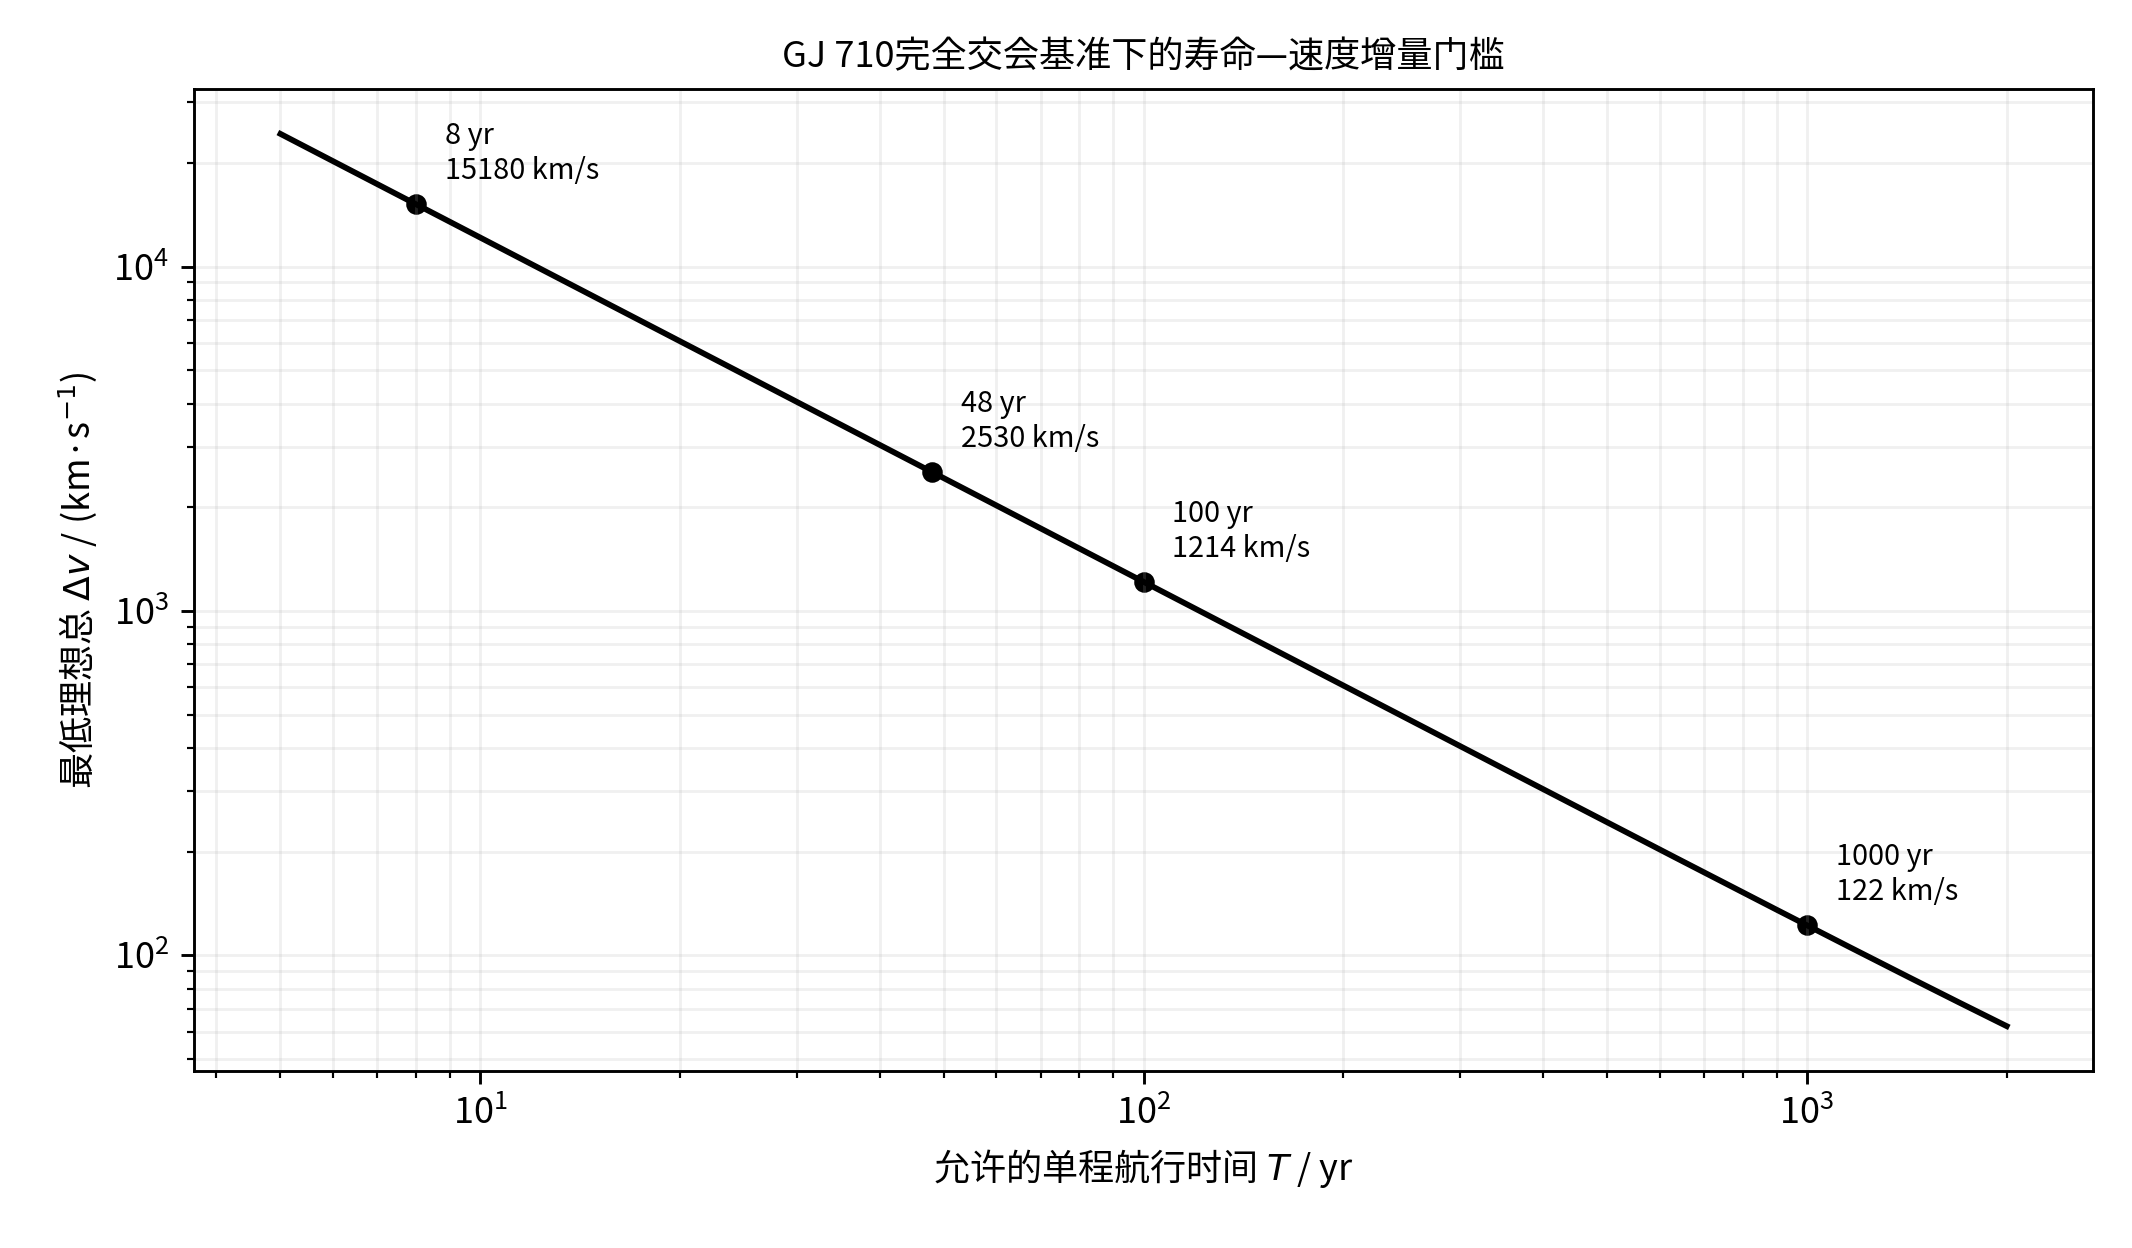
Tanpopo 实验显示,约毫米级 Deinococcus 细胞团在三年空间暴露后仍存在存活,研究者对特定暴露条件给出了约 2~8 yr 和约 48 yr 的外推时间尺度[6]。这些数字来自近地轨道环境和剂量外推,不能直接等同于星际生物寿命,本文只把 8 yr 与 48 yr 作为弱屏蔽压力测试。岩石泛种论和空间微生物学研究则表明,更厚屏蔽会把问题推到不同的时间尺度,但同时显著增加载荷质量[3,26-27]。
5.2 具体架构:最高速度不等于完整迁徙能力
为了避免“某种先进技术也许能做到”这种无法证伪的表述,进一步把推进与制动能力写入 W_arch。Project Longshot 是 1988 年面向 Alpha Centauri 的历史概念方案,采用脉冲聚变推进,并明确包含加速与减速阶段[28]。若仅把其比冲与燃料质量比例代入理想火箭方程,可得到约 1.10×10^4 km/s 的乐观总 Δv 包络。把这一包络与 GJ 710 完全交会模型联合,在 100 yr 系统寿命情境下得到约 78.6 kyr 的非空架构窗口;若寿命压缩到 48 yr,窗口约 36.9 kyr;在 8 yr 情境下,最低 Δv 已超过该理想包络,窗口为空。
Breakthrough Starshot 的基准系统强调利用定向能把克级载荷加速至约 0.2c,目标是高速飞掠 Alpha Centauri[29-30]。在 GJ 710 最近距离上,这一速度对应的几何飞行时间仅约 1 yr,但基准方案没有目标端受控制动与捕获链条,因此在本文“受控生命投放”的任务定义下 W_stop=∅,从而 W_arch=∅。Heller 与 Hippke 曾提出利用 Alpha Centauri 恒星光压和引力对光帆进行减速[31],但这一机制依赖目标恒星和轨迹的具体参数,不能未经重新建模直接移植到 GJ 710。由此可见,最高巡航速度并不是迁徙能力,完整任务闭环才是。
6 目标世界与持续生命谱系建立
6.1 目标环境也是时间窗
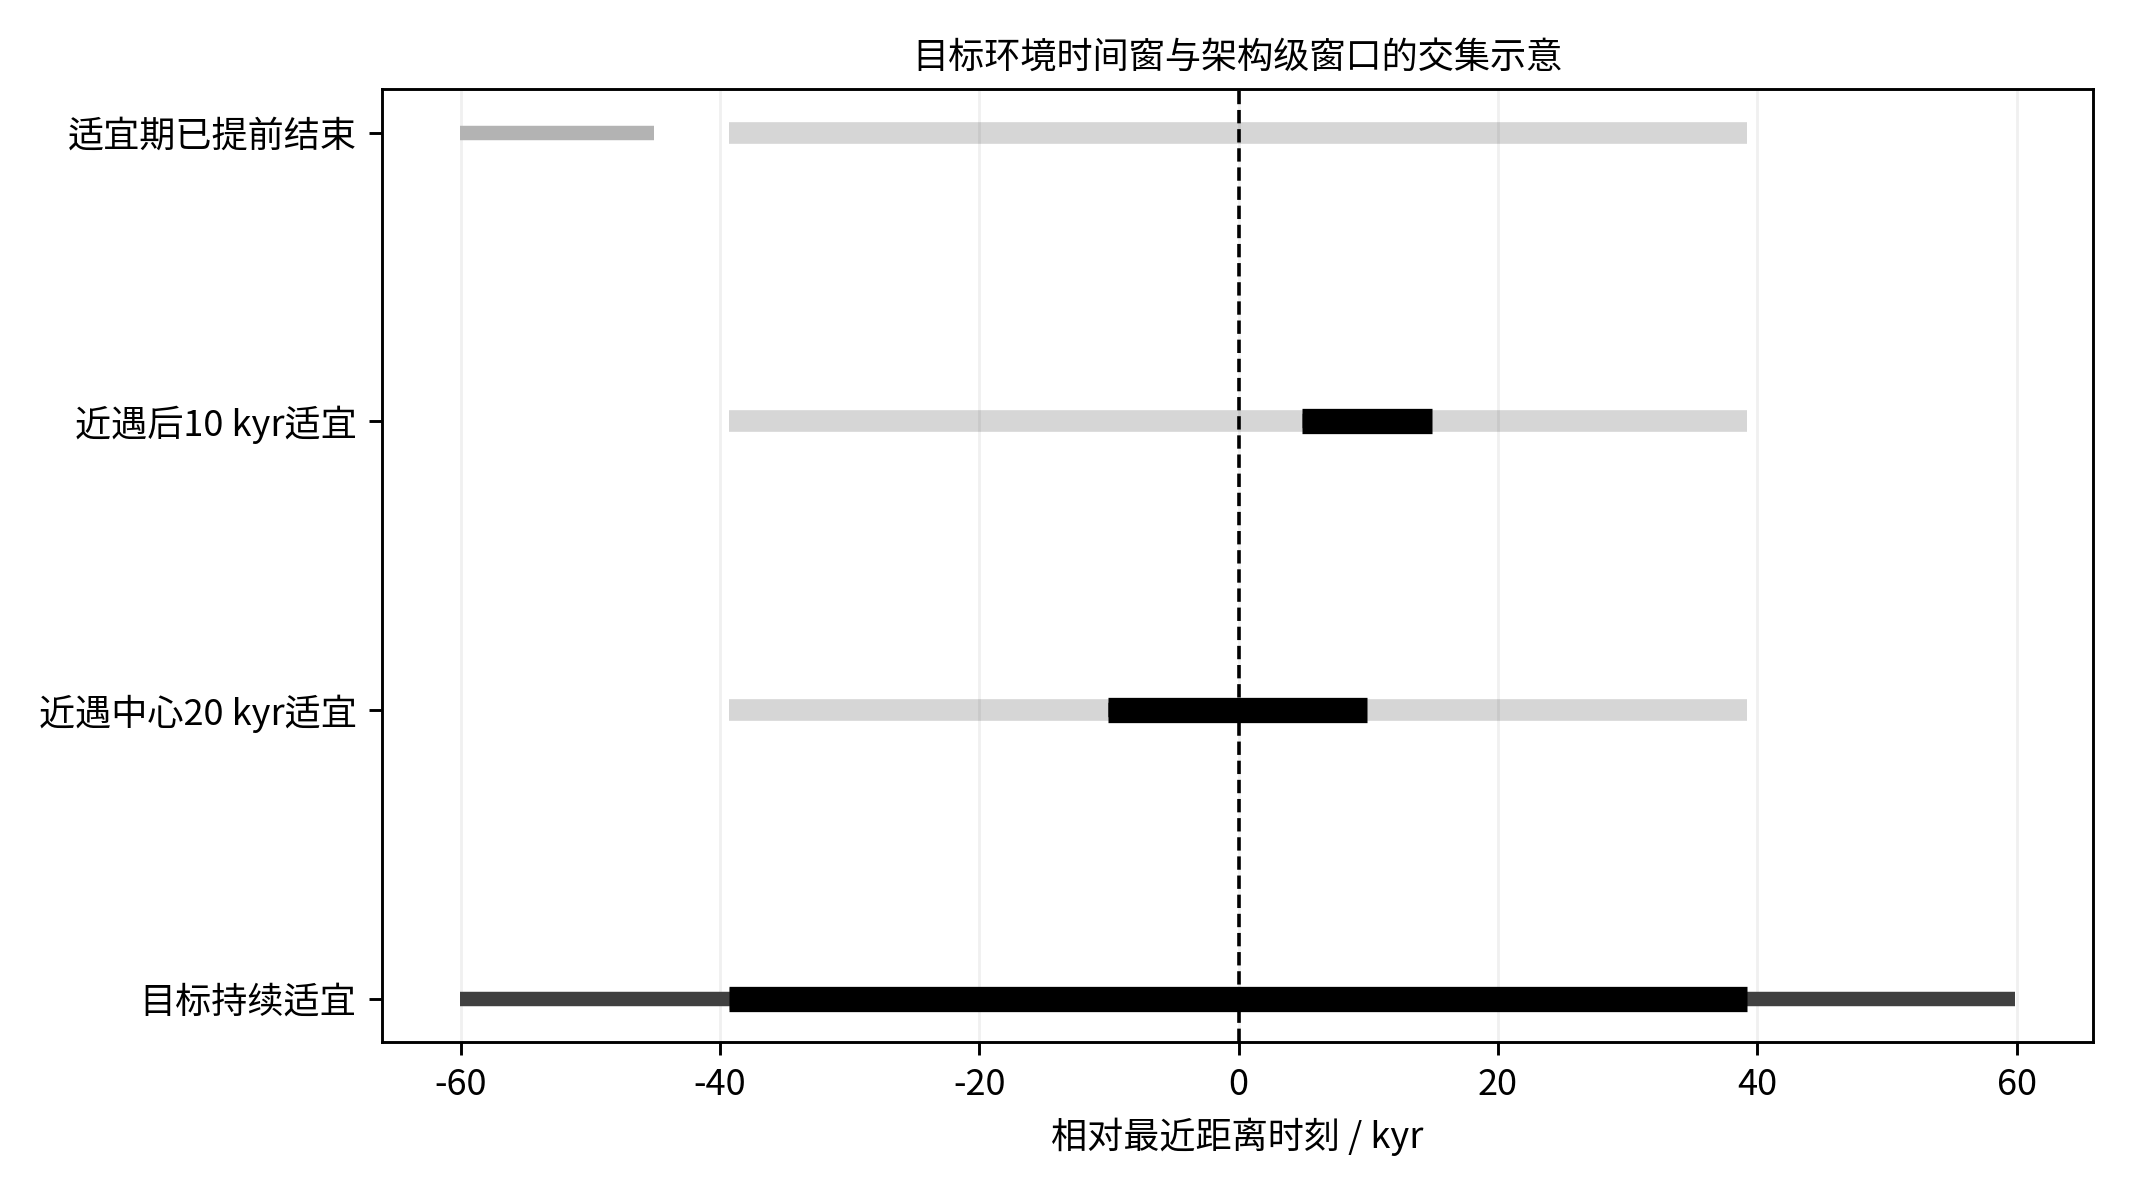
即使 W_arch 非空,目标世界也可能在载荷抵达时不具备适合生命建立的环境。因此定义目标环境适宜集合 W_env,并把发射时刻 τ 映射到实际抵达时刻 t_arr(τ)。只有当发射时刻既属于 W_arch,且抵达时刻落入 W_env,同时满足进入、释放与建立条件时,才属于最终有效窗口 W_eff。
W_eff = W_arch ∩ W̃_env ∩ W_entry ∩ W_release ∩ W_est (6)
6.2 “活体抵达”与“持续谱系建立”不是同一事件
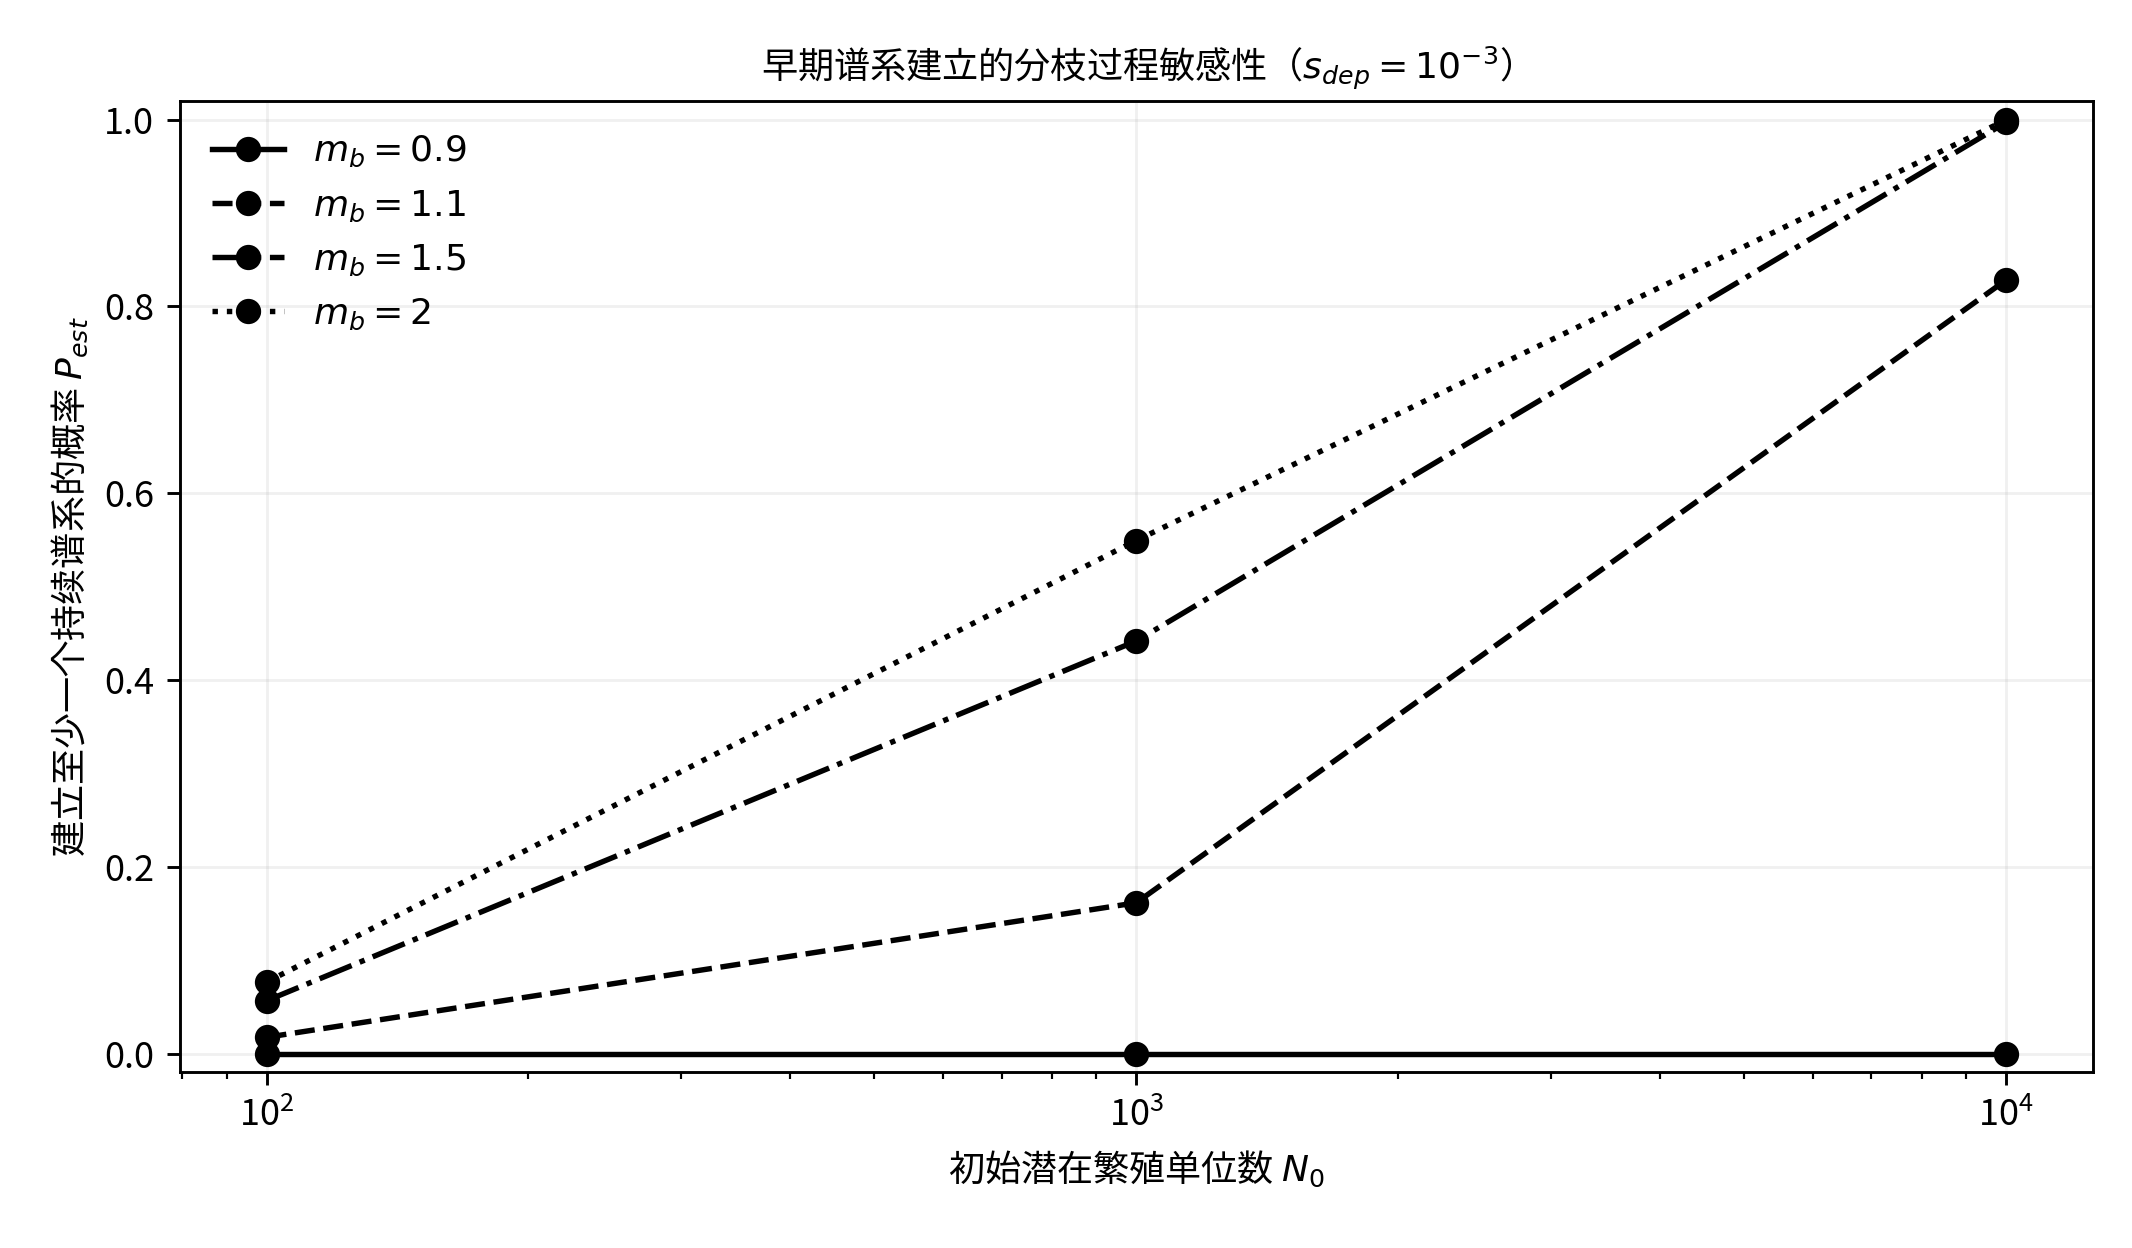
行星保护规范把向潜在宜居环境引入可存活地球生物视为需要严格控制的生物污染风险[32-33],但“存在一个活体”并不意味着它能形成持续谱系。为表示这一差异,引入最低阶分枝过程。设 m_b 为早期阶段每个繁殖单位平均产生的可继续繁殖后代数,在 Poisson 后代分布假设下,单个谱系最终灭绝概率 q 满足:
q = exp[ m_b (q − 1) ] (7)
当 m_b≤1 时 q=1,即在该最简模型中环境长期亚临界,增加初始投放量只能延缓灭绝而不能产生非零永久存续概率;当 m_b>1 时 q<1。若 N_0 为初始潜在繁殖单位数,s_dep 为单个单位经航行、进入、释放后以可恢复状态进入合适微环境的综合概率,则:
P_est = 1 − [ 1 − s_dep(1 − q) ]^N0 (8)
式(7)—(8)只用于阈值和敏感性分析,并不假定地外生态必然服从 Poisson 分枝。现实微生物定殖存在明显的随机瓶颈、竞争、协作代谢和空间异质性[34-35]。
7 可证伪性、再次隔离与地球应用边界
7.1 一个候选迁徙历史如何被排除
CRMM 的价值首先体现为排除力。若高精度天体动力学表明候选来源—目标在关键时期不存在 W_kin,则候选被排除;若所有可辩护推进、寿命和交会方案都使 W_phys 或 W_arch 为空,则候选被工程上排除;若抵达时间与目标环境错开,或所有合理进入、释放和建立模型都使 W_eff 为空,则候选在目标—生态层被排除。一般模型允许某个具体候选彻底失败,这也是其可证伪性的基本要求。
7.2 再次隔离与来源记录丢失
窗口关闭后,来源和目标可以再次远离。物质联系、信息联系与历史记录可能以不同速度中断,因此“后来的目标世界只能重建本地演化史”在逻辑上可能发生。但来源记录丢失只能解释可观测性限制,不能成为外部迁徙的正证据。若某种大规模迁徙按理论应留下长期稳定的技术或地球化学痕迹,而长期未发现相应信号,缺失本身应降低该具体情境的可信度。
7.3 地球只能作为高约束应用假说
CRMM 不依赖“地球生命来自外部”成立。若未来把模型用于早期地球,至少需要同时约束最早生命出现时间、太阳出生环境、银河动力学、可能的历史邻近系统、生命材料存续与地质—生物记录。对于数十亿年前的情境,当前数据不足以可靠逐星点名具体来源,因此合理路径应先做太阳早期环境的统计约束[20-22],而不是从今天的近邻恒星倒推生命来源。
8 讨论
8.1 从“能飞多远”转向“哪一层先失败”
传统讨论容易把星际迁徙压缩为距离或最高速度问题。本文计算显示,同一个 GJ 710 近遇可以在不同层级得到完全不同答案:运动学上存在窗口,受控交会后窗口缩小,指定推进架构后可能继续缩小或消失,目标环境和生态建立又能把非空窗口重新压成空集。因此,CRMM 更适合被理解为诊断框架:它不只问“是否可能”,而是定位“哪一个约束首先使候选历史失败”。
8.2 当前计算的边界
本文仍存在明显限制。GJ 710 近遇采用近遇附近局部直线近似,而不是完整银河势中的高精度任务轨迹积分;完全交会模型把速度变化理想化为瞬时脉冲,没有求解有限推力最优控制;Longshot 只作为历史概念架构的乐观速度增量包络,Starshot 也只按其基准飞掠架构判断;目标环境和建立模型尚无 GJ 710 行星实测数据,因此 W_eff 只做方法学定义和敏感性分析。下一阶段若要提高模型强度,应优先用完整轨道积分和明确任务架构替换这些下限近似,而不是继续增加抽象变量。
8.3 与国内空间生命和系外行星研究的衔接
国内近年的空间生命学科规划已经把生命起源、早期演化和地外天体生命宜居性列为重要方向[36];空间系外行星探测研究则正在向近邻类地行星、轨道参数和宜居性表征推进[37-38]。CRMM 与这些工作的衔接点,不是替代系外行星探测或生命探测,而是在未来获得更精确的目标行星、轨道和环境数据后,为“历史上何时可达、通过何种任务链可达、抵达后是否可能建立生命”提供一个统一的判定接口。
9 结论
本文提出并参数化了宇宙可达性迁徙模型 CRMM。其核心不是“恒星运动会改变距离”,而是把跨恒星系统生命转移拆成一组逐层收缩、允许失败的时间依赖约束。真实 GJ 710 近遇表明,相对运动能够在给定任务能力下产生有限 W_kin;加入受控交会、寿命和具体推进架构后,窗口可显著缩小甚至为空;最终有效迁徙还必须与目标环境、进入释放和持续谱系建立同时闭合。
因此,CRMM 当前最合适的学术定位是一种可参数化、可逐层排除和可证伪的方法框架,而不是已经得到观测验证的宇宙生命迁徙定律。模型不证明地球生命来自外部,也不把证据缺失解释为支持。它提供的是一套可供天体动力学、星际任务物理、空间生命科学与未来比较生命学共同使用的问题结构:对任何具体来源—目标主张,先判断窗口是否存在,再判断哪一层约束能够使其成立或被排除。
数据与代码可用性
本文 GJ 710 示例计算、窗口敏感性与谱系建立敏感性均由解析公式和 Python 脚本生成。投稿时可将计算代码、CSV 结果表和制图脚本作为补充材料一并提交。
作者贡献
张永:研究构想、模型设计、参数化方案、结果解释与论文写作。
利益冲突
作者声明不存在与本文相关的利益冲突。
AI 辅助说明
生成式人工智能工具用于文献检索辅助、代码与语言表达辅助以及版式检查;研究问题、模型边界、参数选择、数值结果核验、文献取舍与最终学术判断均由作者负责。
参考文献
[1] Sutherland J D. Studies on the origin of life—the end of the beginning. Nature Reviews Chemistry, 2017, 1: 0012. https://doi.org/10.1038/s41570-016-0012.
[2] Crick F H C, Orgel L E. Directed panspermia. Icarus, 1973, 19(3): 341–346. https://doi.org/10.1016/0019-1035(73)90110-3.
[3] Mileikowsky C, Cucinotta F A, Wilson J W, et al. Natural Transfer of Viable Microbes in Space: 1. From Mars to Earth and Earth to Mars. Icarus, 2000, 145(2): 391–427. https://doi.org/10.1006/icar.1999.6317.
[4] Adams F C, Spergel D N. Lithopanspermia in Star-Forming Clusters. Astrobiology, 2005, 5(4): 497–514. https://doi.org/10.1089/ast.2005.5.497.
[5] Belbruno E, Moro-Martín A, Malhotra R, Savransky D. Chaotic Exchange of Solid Material Between Planetary Systems: Implications for Lithopanspermia. Astrobiology, 2012, 12(8): 754–774. https://doi.org/10.1089/ast.2012.0825.
[6] Kawaguchi Y, Shibuya M, Kinoshita I, et al. DNA Damage and Survival Time Course of Deinococcal Cell Pellets During 3 Years of Exposure to Outer Space. Frontiers in Microbiology, 2020, 11: 2050. https://doi.org/10.3389/fmicb.2020.02050.
[7] Adams F C, Napier K J. Transfer of Rocks Between Planetary Systems: Panspermia Revisited. Astrobiology, 2022, 22(12): 1429–1442. https://doi.org/10.1089/ast.2021.0187.
[8] Lingam M, Grimaldi C, Balbi A. A birth-death-migration model for life in astrophysical environments. Monthly Notices of the Royal Astronomical Society, 2022, 509(3): 4365–4371. https://doi.org/10.1093/mnras/stab3108.
[9] Bailer-Jones C A L, Rybizki J, Andrae R, Fouesneau M. New stellar encounters discovered in the second Gaia data release. Astronomy & Astrophysics, 2018, 616: A37. https://doi.org/10.1051/0004-6361/201833456.
[10] Gonzalez G, Brownlee D, Ward P. The Galactic Habitable Zone: Galactic Chemical Evolution. Icarus, 2001, 152(1): 185–200. https://doi.org/10.1006/icar.2001.6617.
[11] Lineweaver C H, Fenner Y, Gibson B K. The Galactic Habitable Zone and the Age Distribution of Complex Life in the Milky Way. Science, 2004, 303(5654): 59–62. https://doi.org/10.1126/science.1092322.
[12] Mitrašinović A, Vukotić B, Micic M, Ćirković M M. Dynamical aspects of Galactic habitability in N-body simulations. Publications of the Astronomical Society of Australia, 2023, 40: e054. https://doi.org/10.1017/pasa.2023.54.
[13] Spitoni E, Palla M, Magrini L, et al. Shaping Galactic habitability: Impact of stellar migration and gas giants. Astronomy & Astrophysics, 2025, 700: A58. https://doi.org/10.1051/0004-6361/202555050.
[14] Carroll-Nellenback J, Frank A, Wright J T, Scharf C. The Fermi Paradox and the Aurora Effect: Exo-civilization Settlement, Expansion, and Steady States. The Astronomical Journal, 2019, 158(3): 117. https://doi.org/10.3847/1538-3881/ab31a3.
[15] Haqq-Misra J, Fauchez T J. Galactic Settlement of Low-mass Stars as a Resolution to the Fermi Paradox. The Astronomical Journal, 2022, 164(6): 247. https://doi.org/10.3847/1538-3881/ac9afd.
[16] Adamski P, Eleveld M, Sood A, et al. From self-replication to replicator systems en route to de novo life. Nature Reviews Chemistry, 2020, 4: 386–403. https://doi.org/10.1038/s41570-020-0196-x.
[17] Veras D, Armstrong D J, Blake J A, et al. Dynamical and Biological Panspermia Constraints Within Multi-planet Exosystems. Astrobiology, 2018, 18(9): 1106–1122. https://doi.org/10.1089/ast.2017.1786.
[18] Hansen B M S, Zuckerman B. Minimal Conditions for Survival of Technological Civilizations in the Face of Stellar Evolution. The Astronomical Journal, 2021, 161(3): 145. https://doi.org/10.3847/1538-3881/abd547.
[19] Feng F, Jones H R A. Probabilistic galactic dynamics – I. The Sun and GJ 710 with Monte Carlo, linearized, and unscented treatments. Monthly Notices of the Royal Astronomical Society, 2019, 483(3): 3971–3982. https://doi.org/10.1093/mnras/sty3333.
[20] Adams F C. The Birth Environment of the Solar System. Annual Review of Astronomy and Astrophysics, 2010, 48: 47–85. https://doi.org/10.1146/annurev-astro-081309-130830.
[21] Martínez-Barbosa C A, Brown A G A, Boekholt T, et al. The evolution of the Sun's birth cluster and the search for the solar siblings with Gaia. Monthly Notices of the Royal Astronomical Society, 2016, 457(1): 1062–1075. https://doi.org/10.1093/mnras/stw006.
[22] Desch S, Miret-Roig N. The Sun’s Birth Environment: Context for Meteoritics. Space Science Reviews, 2024, 220(7): 76. https://doi.org/10.1007/s11214-024-01113-x.
[23] Fernandez-Puig E, Morales J C, Ribas I, Laguna-Miralles J, Guijosa P. Stellar encounters in the solar neighbourhood and the special case of GJ 710. Astronomy & Astrophysics, 2026, 710: A252. https://doi.org/10.1051/0004-6361/202659497.
[24] Bailer-Jones C A L. Stars That Approach within One Parsec of the Sun: New and More Accurate Encounters Identified in Gaia Data Release 3. The Astrophysical Journal Letters, 2022, 935(1): L9. https://doi.org/10.3847/2041-8213/ac816a.
[25] NASA Science. Voyager 1: The Farthest Spacecraft[EB/OL]. https://science.nasa.gov/mission/voyager/voyager-1/ (accessed 2026-10-04).
[26] Horneck G, Klaus D M, Mancinelli R L. Space Microbiology. Microbiology and Molecular Biology Reviews, 2010, 74(1): 121–156. https://doi.org/10.1128/MMBR.00016-09.
[27] Valtonen M, Nurmi P, Zheng J-Q, et al. Natural Transfer of Viable Microbes in Space from Planets in the Extra-Solar Systems to a Planet in Our Solar System and Vice Versa. The Astrophysical Journal, 2009, 690(1): 210–215. https://doi.org/10.1088/0004-637X/690/1/210.
[28] Beals K A, Beaulieu M, Dembia F J, et al. Project Longshot: An Unmanned Probe to Alpha Centauri[R]. NASA-CR-184718, 1988. https://ntrs.nasa.gov/citations/19890007533.
[29] Parkin K L G. The Breakthrough Starshot system model. Acta Astronautica, 2018, 152: 370–384. https://doi.org/10.1016/j.actaastro.2018.08.035.
[30] Lubin P. A Roadmap to Interstellar Flight. Journal of the British Interplanetary Society, 2016, 69: 40–72. arXiv:1604.01356.
[31] Heller R, Hippke M. Deceleration of High-velocity Interstellar Photon Sails into Bound Orbits at α Centauri. The Astrophysical Journal Letters, 2017, 835(2): L32. https://doi.org/10.3847/2041-8213/835/2/L32.
[32] National Aeronautics and Space Administration. NASA-STD-8719.27: Implementing Planetary Protection Requirements for Space Flight[S]. 2022.
[33] Hedman N, Coustenis A, Doran P, et al. The COSPAR Panel on Planetary Protection and the COSPAR Policy on Planetary Protection: an overview of governance and activities. Philosophical Transactions of the Royal Society A, 2026, 384(2314): 20240429. https://doi.org/10.1098/rsta.2024.0429.
[34] Xia X. The Branching Process: A General Conceptual Framework for Addressing Current Ecological and Evolutionary Questions. Life, 2025, 15(12): 1910. https://doi.org/10.3390/life15121910.
[35] Obadia B, Güvener Z T, Zhang V, et al. Probabilistic Invasion Underlies Natural Gut Microbiome Stability. Current Biology, 2017, 27(13): 1999–2006.e8. https://doi.org/10.1016/j.cub.2017.05.034.
[36] 赵玉芬, 华跃进, 李一良, 等. 空间生命学科发展战略研究[J]. 空间科学学报, 2024, 44(3): 387-399. DOI: 10.11728/cjss2024.03.2024-yg07.
[37] 周济林, 谢基伟, 葛健, 等. 空间系外行星探测与研究进展[J]. 空间科学学报, 2024, 44(1): 5-18. DOI: 10.11728/cjss2024.01.2024-yg01.
[38] 田丰, 胡雄, 吴季. 系外行星大气与宜居系外行星研究进展及发展趋势[J]. 空间科学学报, 2016, 36(6): 815-827. DOI: 10.11728/cjss2016.06.815.
阅读 — · 读完 —
评论
暂时还没有评论。